


Пресс-центр / новости / Наука /
Создан генетически кодируемый инструмент для активации окислительного метаболизма митохондрий
Ученые создали генетически кодируемый инструмент Grubraw, который способен генерировать в матриксе митохондрий пируват – один из главных субстратов окислительного метаболизма. Активность Grubraw увеличивала интенсивность аэробного метаболизма митохондрий в опухолевых клетках и замедляла скорость роста опухолевых клеток в культуре и в модели ксенотрансплантатов в мышах. При этом наблюдалось уменьшение транскрипции генов, связанных с репликацией ДНК и пролиферацией. Кроме того, оказалось, что опухолевые клетки противодействуют влиянию Grubraw, выводя часть сгенерированного пирувата во внеклеточную среду. Результаты исследования, поддержанного грантом РНФ № 23-75-30023, опубликованы в журнале Nature Chemical Biology.
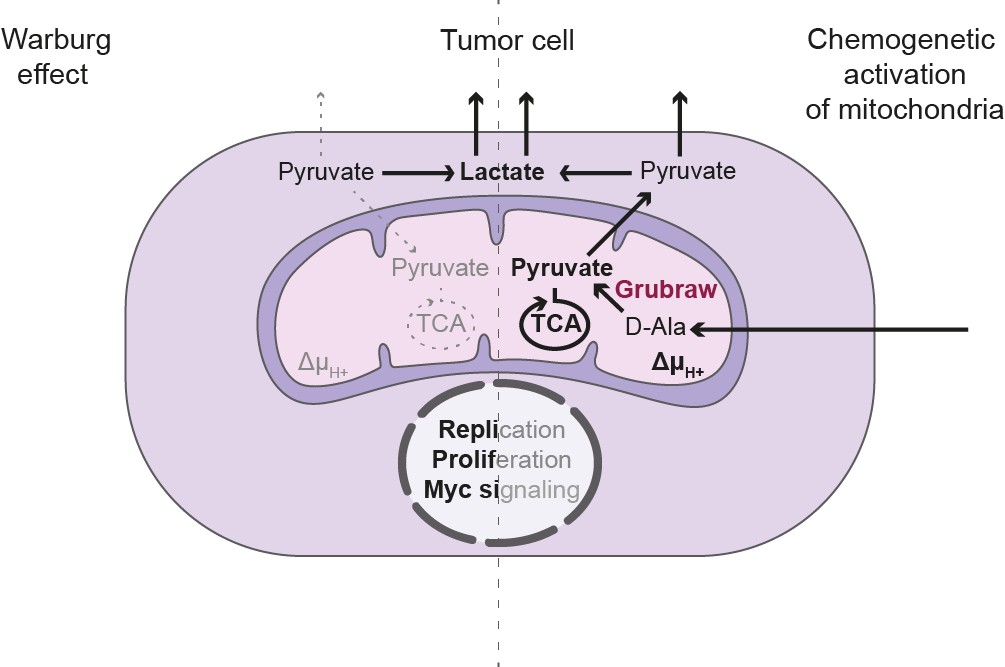
Тип метаболизма животной клетки зависит от вида её дифференцировки, скорости пролиферации и других факторов. В покоящихся дифференцированных клетках образованный при гликолизе пируват отправляется в митохондрии и становится субстратом для окислительного фосфорилирования. Активно пролиферирующие клетки подавляют окислительное фосфорилирование и получают энергию в основном за счёт гликолиза. Такой тип метаболизма называется эффектом Варбурга и наблюдается в эмбриональных клетках, активированных лимфоцитах, а также в опухолевых клетках. Обратный переход к аэробному метаболизму может замедлять рост и метастазирование опухолей.
Чтобы исследовать причинно-следственные связи между переключением метаболизма и патологической пролиферацией, необходимы инструменты для искусственного контроля метаболизма. Подобные инструменты должны влиять на ключевые точки в нормальном и патологическом обмене. Например, попадание пирувата в матрикс митохондрий – это точка ветвления между путями аэробного гликолиза и окислительного фосфорилирования. В опухолевых клетках импорт пирувата в матрикс часто подавлен за счет делеций в гене митохондриального переносчика пирувата MPC, повышенной активности лактатдегидрогеназы и транспортеров лактата и других механизмов.
Ученые из Отдела метаболизма и редокс биологии ИБХ РНА, Федерального центра мозга и нейротехнологий ФМБА России, Пироговского Университета и научного центра LIFT, в соавторстве с коллегами из из других ведущих научных центров страны, предположили, что можно активировать окислительный метаболизм митохондрий, если генерировать пируват непосредственно в матриксе с помощью гетерологичного белка – дегидрогеназы D- аминокислот из бактерии Pseudomonas aeruginosa. Этот фермент стереоспецифично окисляет D-аланин с образованием пирувата, аммиака и восстановленного FADH2 . Если поместить такой фермент в матрикс митохондрий, то после добавки D-аланина извне он будет повышать концентрацию пирувата в матриксе. Поскольку D-аланин практически отсутствует в большинстве тканей млекопитающих, но способен проходить в матрикс митохондрий из внешней среды, активность фермента контролируется добавлением субстрата извне. Оптимизированный для использования в клетках млекопитающих молекулярный инструмент Grubraw (Варбург наоборот) – это химерная конструкция из сигнала митохондриальной локализации, флуоресцентного репортера и дегидрогеназы D-аминокислот. Также в экспериментах использовали мутантную версию Grubraw, лишенную ферментативной активности, что позволяло исключить неспецифическое влияние от добавки D-аланина или экспрессии в клетках гетерологичного белка.
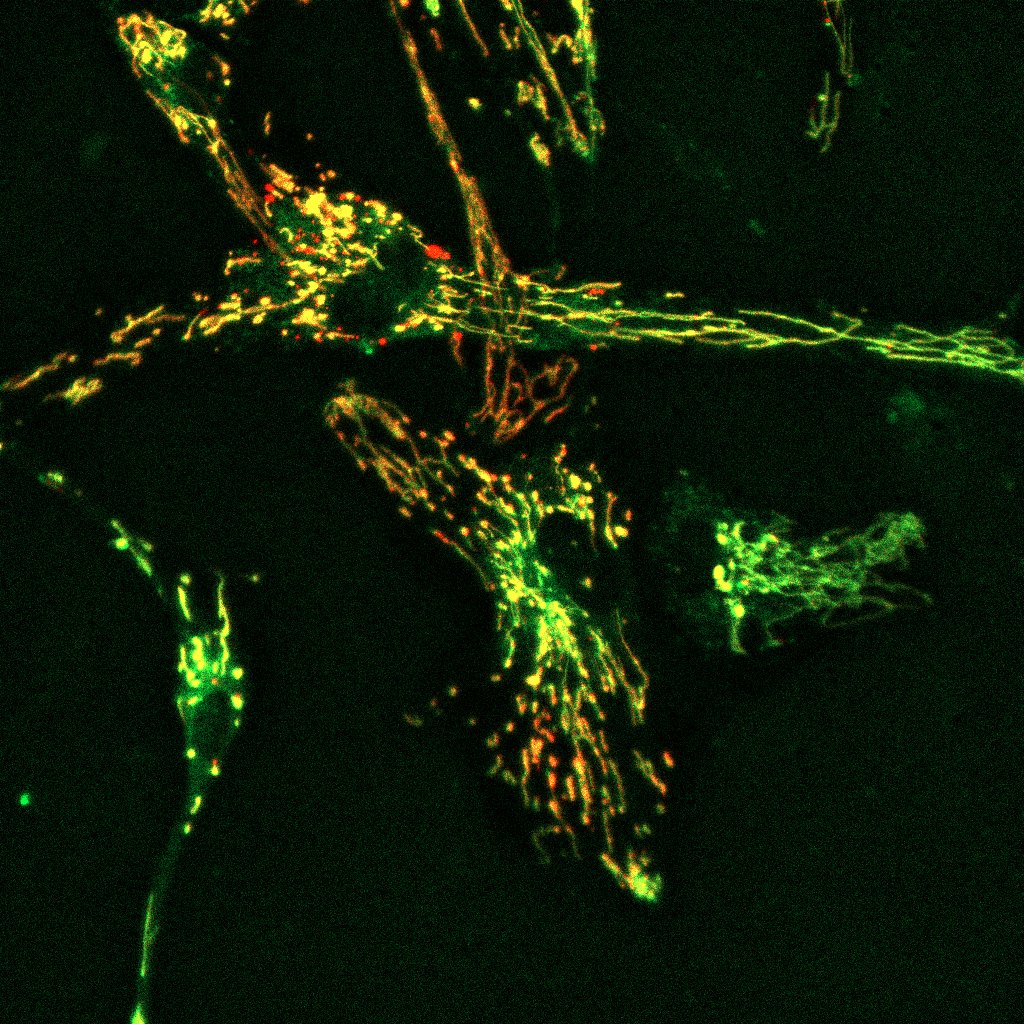
Рис. 1. Фибробласты человека 1608, экспрессирующие mRuby-Grubraw (красный) и окрашенные индикатором митохондрий MitoTracker Green (зеленый).
Активность Grubraw в клетках рака шейки матки HeLa Kyoto увеличивала концентрацию пирувата в матриксе митохондрий, мембранный потенциал митохондрий, скорость поглощения кислорода, а также внутриклеточные концентрации метаболитов цикла Кребса, таких как α-кетоглутарат и оксалоацетат. Было показано, что углеродный скелет из D-аланина поступает в пул интермедиатов цикла Кребса, а электроны с кофактора FADH2 передаются в электрон-транспортную цепь митохондрий, вероятно, на убихинон. Эти данные свидетельствуют об интенсификации окислительного метаболизма митохондрий.
При этом скорость поглощения глюкозы и генерации лактата клетками не изменились – следовательно, активация окислительного метаболизма митохондрий не повлияла на скорость гликолиза. Кроме того, активность Grubraw не приводила к изменениям pH митохондриального матрикса или генерации активных форм кислорода, то есть не наблюдалось явных признаков стресса митохондрий.
С другой стороны, обнаружилось, что целый ряд опухолевых клеточных линий с выраженным гликолитическим метаболизмом выбрасывали часть сгенерированного Grubraw пирувата во внеклеточную среду, в то время как в неопухолевых клеточных линиях с оксидативным типом метаболизма такого эффекта не наблюдалось. Было установлено, что излишки пирувата выводились из матрикса в цитозоль в виде интермедиатов цикла Кребса и там преобразовывались обратно в пируват, а затем экспортировались наружу через монокарбоксилатные транспортеры. Исследователи предположили, что наблюдаемый эффект – это ещё один из механизмов, обеспечивающих подавление окислительного метаболизма.
Наконец, было показано, что активность Grubraw подавляет пролиферацию в большинстве протестированных клеточных линий, вне зависимости от типа их метаболизма. Кроме того, активность Grubraw замедляла рост ксенотрансплантатов меланомы человека Lu451 в иммунодефицитных мышах.
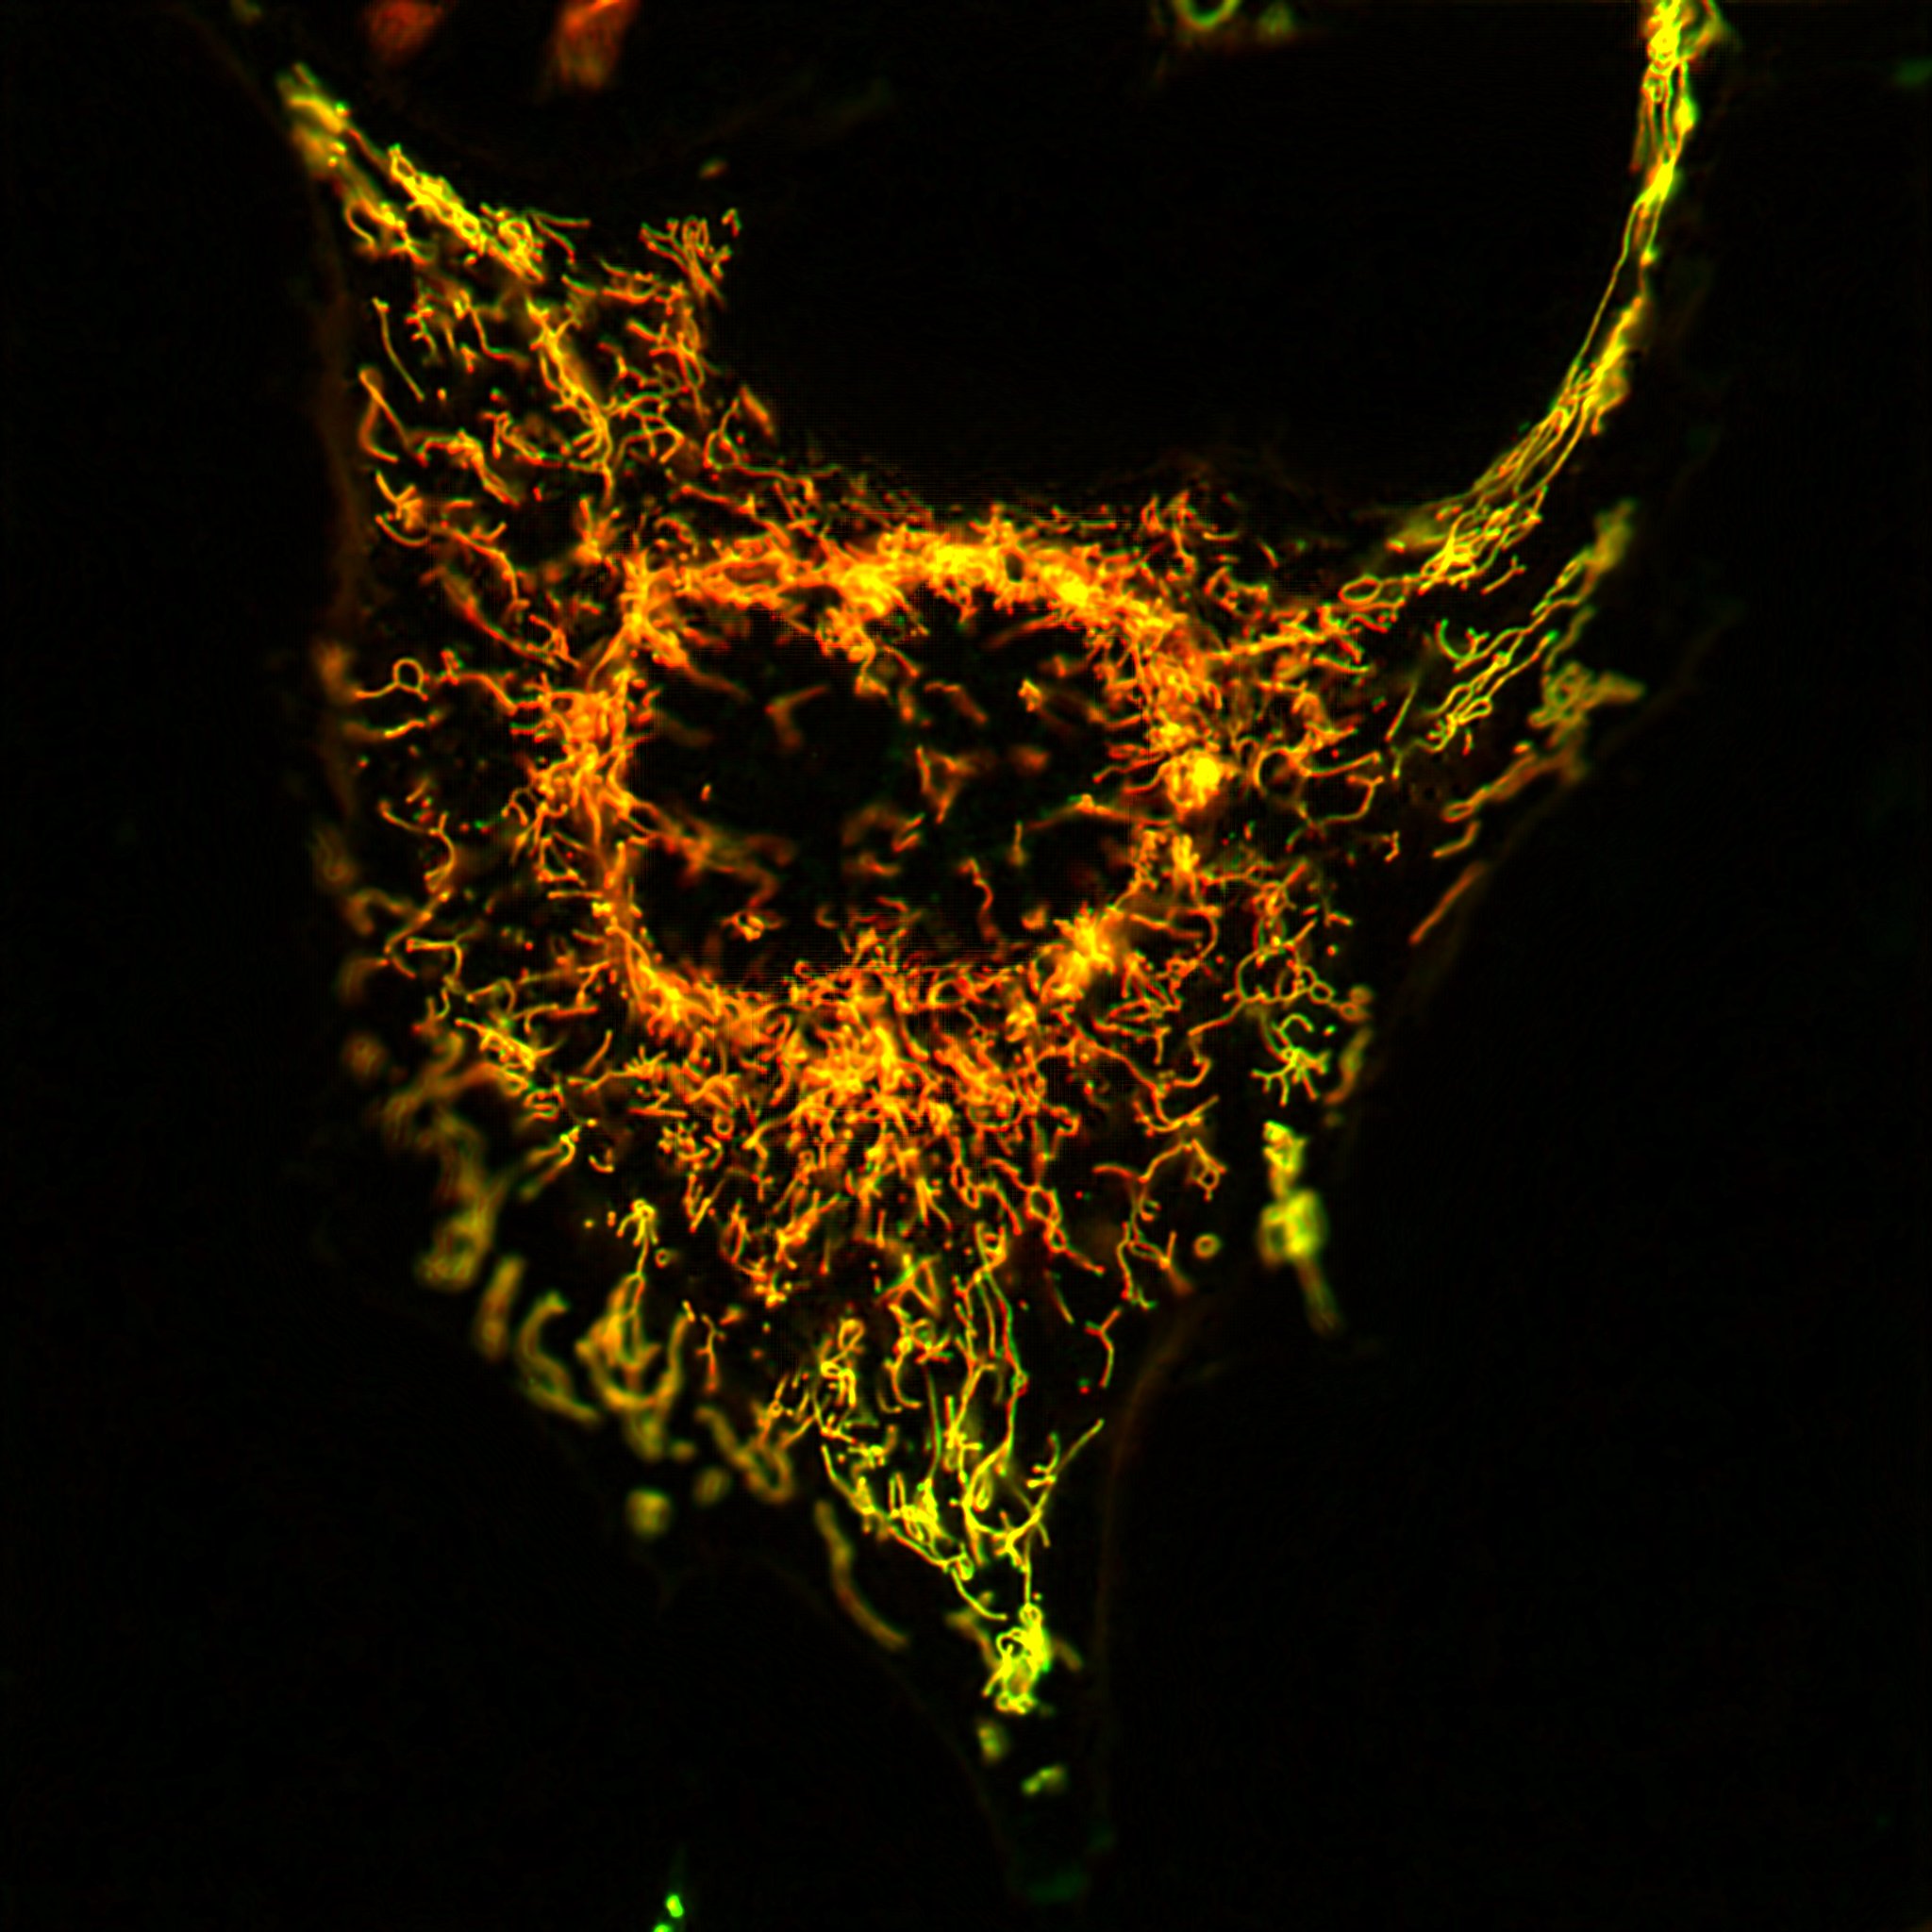
Рис. 2. Клетки меланомы человека Lu451, экспрессирующие mRuby-Grubraw (красный) и окрашенные индикатором митохондрий MitoTracker Green (зеленый).
Важно было исключить, что подавление пролиферации происходит из-за неспецифического воздействия активности Grubraw на клеточные процессы. Так, один из продуктов окислительного дезаминирования D-аланина – это аммоний, который в некоторых случаях замедляет рост клеток. Однако было показано, что в экспериментальных условиях Grubraw генерирует недостаточно аммония, чтобы подавить пролиферацию. Ещё один возможный неспецифический эффект, конкуренция Grubraw за акцептор электронов убихинон с путём синтеза пиримидинов, также был исключен.
Кроме того, исследователи определили, как активность Grubraw влияет на транскриптом культуры меланомы Lu451. В клетках с активированными митохондриями уменьшилась экспрессия генов, связанных с прохождением клеточного цикла, репликацией ДНК и пролиферацией. Полученные данные свидетельствовали о снижении активности транскрипционных факторов MYC и E2F, которые регулируют как репликацию, так и метаболизм. При этом не наблюдалось изменений экспрессии генов, характерных для стресса или клеточного старения. Полученные данные позволяют предположить, что замедление пролиферации клеток происходит за счёт специфического регуляторного механизма, запускаемого активно дышащими митохондриями. Однако участников этого регуляторного пути ещё только предстоит определить.
24 октября